
Introducción
El estrés fisiológico es la respuesta coordinada del organismo ante demandas que requieren adaptación. Incluye cambios nerviosos, hormonales y conductuales que permiten afrontar un desafío y reorganizar temporalmente las prioridades del cuerpo. En este contexto, «estrés» no designa únicamente una sensación de preocupación: también describe procesos biológicos que pueden estudiarse mediante señales celulares, actividad de circuitos y respuestas endocrinas.
El sistema endocannabinoide (SEC) participa en los circuitos que regulan estas respuestas. Sus efectos dependen de la región cerebral, el tipo de conexión neuronal y el momento del proceso. La anandamida (AEA) y el 2-araquidonoilglicerol (2-AG) no cambian necesariamente en la misma dirección ni cumplen funciones intercambiables. Los experimentos sobre estrés agudo y repetido muestran precisamente esa diversidad (Hill et al., 2009; Hill et al., 2010; Rademacher et al., 2008).
La regulación endocannabinoide del estrés conecta la señalización sináptica con la actividad del eje hipotálamo-hipófisis-adrenal. A través de mecanismos locales y de la comunicación entre regiones cerebrales, el SEC contribuye a ajustar la activación, la duración y la finalización de la respuesta. Esta organización permite estudiar de forma integrada la adaptación neuroendocrina y los procesos de aprendizaje relacionados con experiencias aversivas (Di et al., 2003; Hill et al., 2011).
Historia
Una aportación decisiva llegó en 2003, cuando Di y colaboradores describieron en preparaciones hipotalámicas un mecanismo rápido por el que los glucocorticoides reducían la entrada excitadora sobre neuronas neuroendocrinas a través de señalización endocannabinoide. El hallazgo conectó la acción hormonal con una forma local de comunicación sináptica y ofreció una explicación para parte de la retroalimentación rápida del eje del estrés (Di et al., 2003).
Los estudios posteriores permitieron separar fases. En 2009 se relacionó la reducción de señalización endocannabinoide en la amígdala con la activación del eje hipotálamo-hipófisis-adrenal. En 2010 se investigó su participación en la adaptación a un estresor repetido; en 2011, la señalización endocannabinoide prefrontal se vinculó experimentalmente con la terminación de la respuesta hormonal (Hill et al., 2009; Hill et al., 2010; Hill et al., 2011).
La investigación se ha extendido después a genética humana y ensayos farmacológicos. Esta transición es esencial: confirmar un mecanismo en roedores permite formular una hipótesis clínica, pero su utilidad terapéutica debe comprobarse por separado (Dincheva et al., 2015; Mayo et al., 2020; Mayo et al., 2025).
Organización y distribución del sistema endocannabinoide en la respuesta al estrés
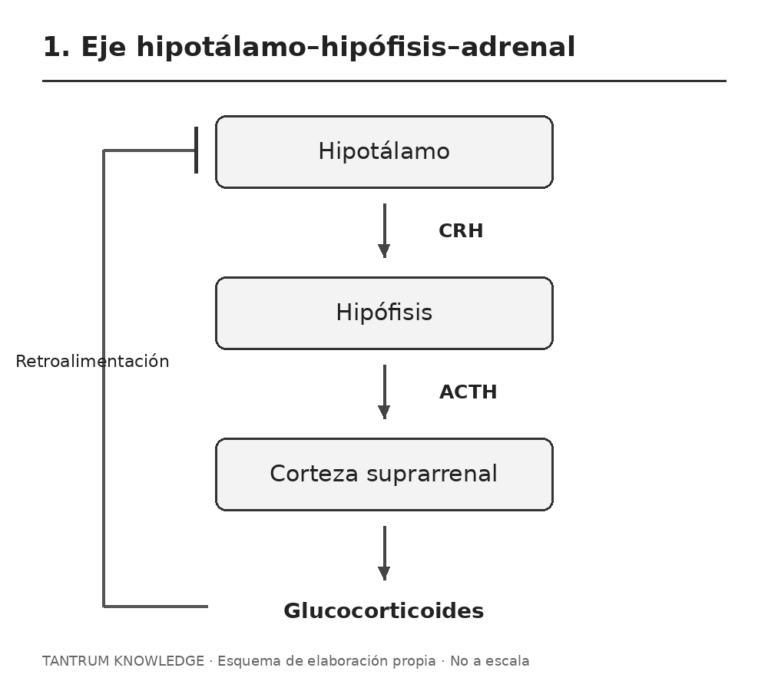
El eje HHA, también denominado HPA por sus siglas inglesas, integra señales cerebrales y una respuesta hormonal. La CRH hipotalámica favorece la liberación de ACTH desde la hipófisis; esta estimula la secreción de glucocorticoides en la corteza suprarrenal. El cortisol es un glucocorticoide principal en humanos, mientras que numerosos experimentos con roedores miden corticosterona. Las hormonas liberadas retroactúan sobre el sistema para regular su actividad (Evanson et al., 2010).
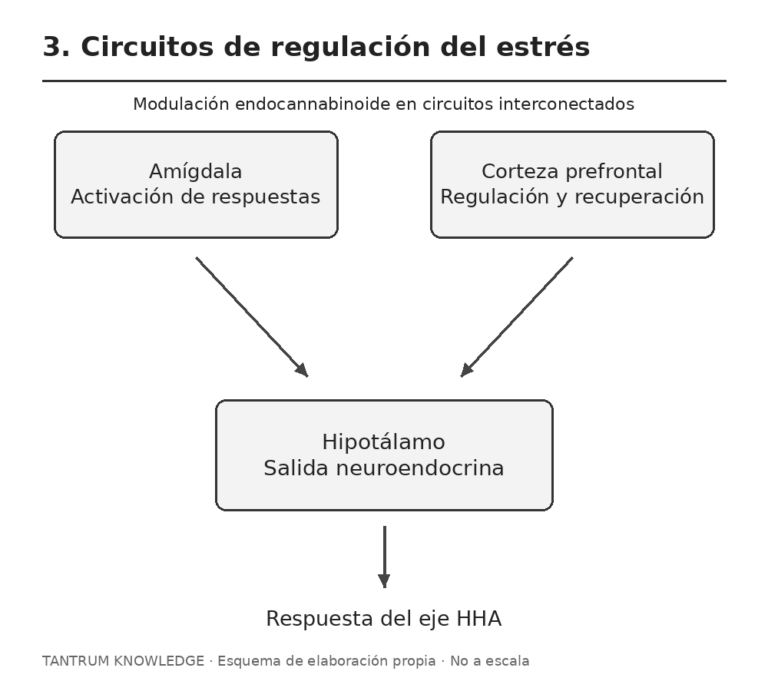
Los circuitos de la amígdala participan en la evaluación y expresión de respuestas ante estímulos relevantes. En modelos de estrés, la pérdida de tono de AEA puede facilitar la activación de esta red. En el hipotálamo, los endocannabinoides participan en mecanismos locales de retroalimentación. La corteza prefrontal aporta otra vía reguladora, conectada mediante circuitos intermedios con la respuesta neuroendocrina (Hill et al., 2009; Evanson et al., 2010; Hill et al., 2011).
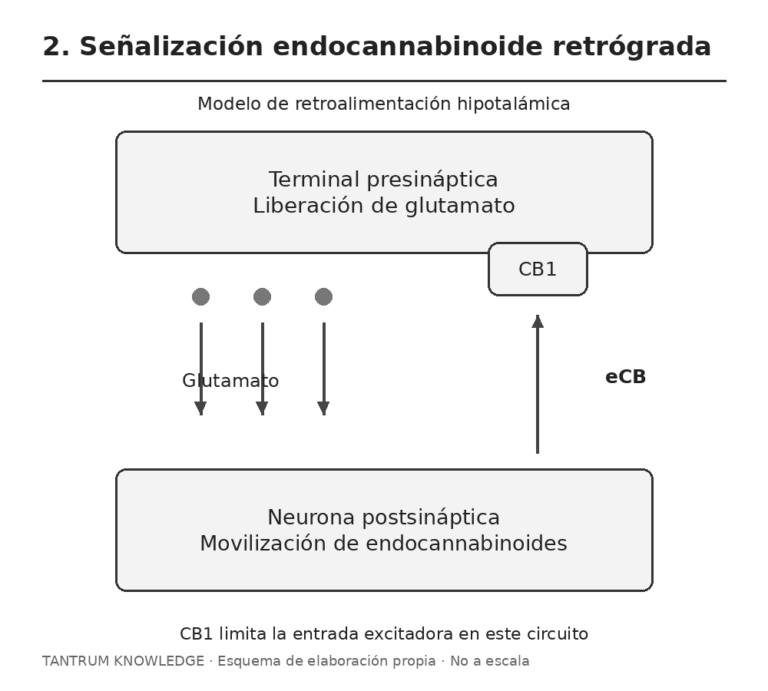
En estas conexiones, la localización de CB1 importa tanto como su presencia. Disminuir la liberación de un neurotransmisor excitador y disminuir la de uno inhibidor no produce necesariamente el mismo efecto sobre la actividad final de una red. Por eso no existe una traducción universal de «activar CB1» a «relajar el organismo» (Di et al., 2003; Hill et al., 2011).
Mecanismos
En la amígdala, determinados paradigmas de estrés reducen la disponibilidad de AEA y modifican su degradación por FAAH. Al disminuir esta señal se reduce parte de la contención endocannabinoide del circuito. Los experimentos farmacológicos permiten investigar si conservar la señal de AEA cambia la respuesta hormonal al desafío (Hill et al., 2009).
Este patrón no debe extrapolarse a todo el cerebro. Rademacher y colaboradores midieron cambios distintos según la región y el número de exposiciones: en la amígdala de ratones, la AEA disminuyó tras exposiciones agudas y repetidas, mientras que el aumento de 2-AG apareció después de una serie más prolongada de sesiones de restricción (Rademacher et al., 2008).
En el núcleo paraventricular del hipotálamo, los glucocorticoides pueden movilizar señalización endocannabinoide que actúa sobre CB1 presináptico y reduce la liberación de glutamato. Se trata de una señal retrógrada: la neurona receptora de la conexión influye sobre la terminal que le envía información. En este contexto experimental, el mecanismo reduce parte del impulso excitador hacia la respuesta neuroendocrina (Di et al., 2003).
Experimentos posteriores en animales apoyaron la participación de esta vía en la retroalimentación rápida del eje HHA. Que una hormona ayude a limitar su propia respuesta mediante un circuito local no significa que toda elevación de glucocorticoides sea perjudicial; la retroalimentación forma parte de su regulación normal (Evanson et al., 2010).
En ratas, bloquear CB1 en corteza prefrontal prolongó la secreción de corticosterona después de finalizar el estresor. El estudio también relacionó el aumento local de 2-AG con señalización de glucocorticoides, apoyando la existencia de una contribución prefrontal al cierre de la respuesta (Hill et al., 2011).
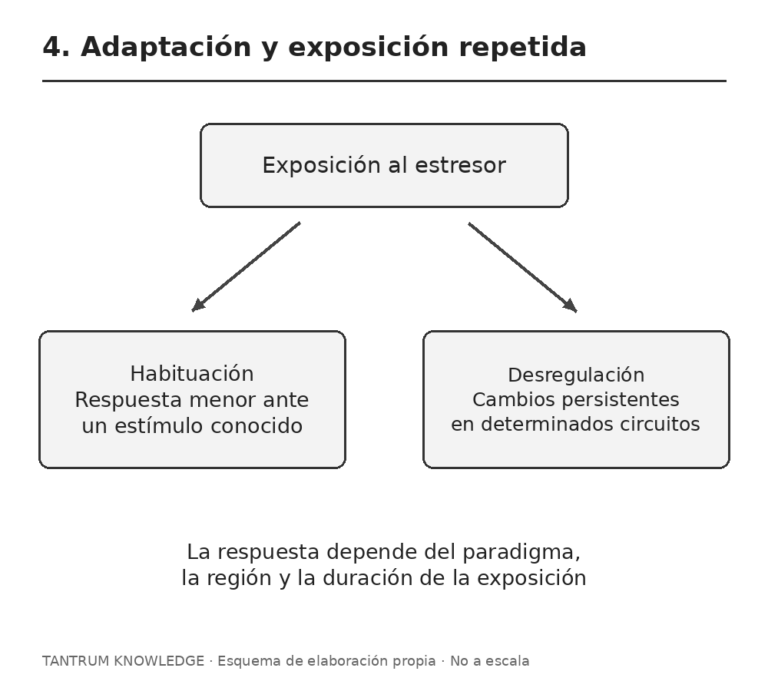
La exposición repetida a un mismo estímulo puede producir habituación: una respuesta menor ante una demanda conocida. En modelos de restricción repetida, el bloqueo de CB1 impidió parte de esa reducción hormonal. Es un mecanismo de adaptación bajo condiciones controladas, no una garantía de que cualquier exposición repetida al estrés resulte beneficiosa (Hill et al., 2010).
Funciones fisiológicas
La adaptación al estrés requiere coordinar procesos de activación y recuperación. La reducción transitoria de señalización de AEA observada en determinados circuitos amigdalinos puede facilitar el inicio de la respuesta, mientras que el reclutamiento endocannabinoide hipotalámico y prefrontal contribuye a mecanismos de retroalimentación. Estas acciones tienen una distribución espacial y temporal específica, que permite modular diferentes fases del proceso (Hill et al., 2009; Evanson et al., 2010; Hill et al., 2011).
El SEC contribuye a regular cuándo se activa una respuesta, cuánto se mantiene y cómo se recupera el sistema después. Los estudios de amígdala, hipotálamo y corteza prefrontal muestran que estas funciones se distribuyen entre circuitos y escalas temporales. La regulación depende de la coordinación, no simplemente de mantener una concentración alta de un único endocannabinoide (Hill et al., 2009; Hill et al., 2011; Evanson et al., 2010).
La extinción del miedo es un proceso de aprendizaje por el que un estímulo previamente asociado a peligro deja de provocar la misma respuesta cuando cambia el contexto. Un estudio de variación genética de FAAH encontró relaciones entre señalización endocannabinoide, función frontoamigdalina y extinción en ratones y humanos. Esto apoya la relevancia del sistema para actualizar respuestas aprendidas, aunque no convierte una variante genética en una medida individual de «resiliencia» (Dincheva et al., 2015).
La repetición también puede alterar el funcionamiento endocannabinoide. Se ha observado deterioro de determinados mecanismos de señalización en el hipotálamo tras estrés repetido, y trabajos sobre conexiones amígdala-corteza prefrontal han relacionado la pérdida de señal de 2-AG con fortalecimiento sináptico y conductas similares a ansiedad en modelos animales. Adaptación y desregulación pueden coexistir en distintos circuitos (Wamsteeker et al., 2010; Marcus et al., 2020).
Los cambios en los endocannabinoides también relacionan la experiencia previa con la respuesta a estímulos posteriores. En paradigmas de exposición repetida se han descrito modificaciones de AEA y 2-AG que dependen de la región cerebral y del número de sesiones. Estas adaptaciones permiten investigar cómo la historia de exposición influye en la respuesta neuroendocrina y en la capacidad de modificar respuestas aprendidas (Rademacher et al., 2008; Hill et al., 2010).
Implicaciones en investigación biomédica
Un ensayo de medicina experimental en 45 adultos sanos comparó un inhibidor de FAAH con placebo. Tras diez días, se observaron mayor AEA, mejor recuerdo de la extinción y cambios en determinadas medidas de reactividad al estrés. Su tamaño y el uso de participantes sanos limitan la extrapolación a trastornos clínicos. Además, un inhibidor selectivo de FAAH no es equivalente a CBD o cannabis (Mayo et al., 2020).
En 2025, un ensayo aleatorizado con 100 personas con trastorno de estrés postraumático evaluó un inhibidor de FAAH como complemento de terapia cognitivo-conductual por internet. Aunque aumentó AEA, no mejoró los síntomas frente a placebo añadido a la misma terapia. El resultado distingue con claridad modificar una diana biológica de demostrar un beneficio clínico (Mayo et al., 2025).
Una revisión sistemática preclínica de 2025, con 21 artículos, encontró efectos inconsistentes de la inhibición de FAAH sobre corticosterona. Las diferencias dependían del compuesto, el contexto de estrés y otras características experimentales. Por tanto, tampoco en animales puede resumirse esta intervención como una reducción hormonal uniforme (Pereira et al., 2025).
En conjunto, el estudio del SEC ofrece un marco para comprender la integración entre hormonas, circuitos neuronales y aprendizaje en la respuesta al estrés. La investigación continúa analizando qué mecanismos se conservan entre especies y en qué condiciones la modulación de una diana concreta puede traducirse en resultados clínicos relevantes. Los hallazgos sobre inhibidores selectivos de FAAH no pueden extrapolarse directamente a otros compuestos cannabinoides (Mayo et al., 2020; Mayo et al., 2025; Pereira et al., 2025).
Véase también
Referencias
- Di S, Malcher-Lopes R, Halmos KC, et al. Nongenomic glucocorticoid inhibition via endocannabinoid release in the hypothalamus: a fast feedback mechanism. The Journal of neuroscience : the official journal of the Society for Neuroscience. 2003;23(12):4850.
- Dincheva I, Drysdale AT, Hartley CA, et al. FAAH genetic variation enhances fronto-amygdala function in mouse and human. Nature communications. 2015;6:6395.
- Evanson NK, Tasker JG, Hill MN, et al. Fast feedback inhibition of the HPA axis by glucocorticoids is mediated by endocannabinoid signaling. Endocrinology. 2010;151(10):4811.
- Hill MN, McLaughlin RJ, Bingham B, et al. Endogenous cannabinoid signaling is essential for stress adaptation. Proceedings of the National Academy of Sciences of the United States of America. 2010;107(20):9406.
- Hill MN, McLaughlin RJ, Morrish AC, et al. Suppression of amygdalar endocannabinoid signaling by stress contributes to activation of the hypothalamic-pituitary-adrenal axis. Neuropsychopharmacology : official publication of the American College of Neuropsychopharmacology. 2009;34(13):2733.
- Hill MN, McLaughlin RJ, Pan B, et al. Recruitment of prefrontal cortical endocannabinoid signaling by glucocorticoids contributes to termination of the stress response. The Journal of neuroscience : the official journal of the Society for Neuroscience. 2011;31(29):10506.
- Marcus DJ, Bedse G, Gaulden AD, et al. Endocannabinoid Signaling Collapse Mediates Stress-Induced Amygdalo-Cortical Strengthening. Neuron. 2020;105(6):1062.
- Mayo LM, Asratian A, Lindé J, et al. Elevated Anandamide, Enhanced Recall of Fear Extinction, and Attenuated Stress Responses Following Inhibition of Fatty Acid Amide Hydrolase: A Randomized, Controlled Experimental Medicine Trial. Biological psychiatry. 2020;87(6):538.
- Mayo LM, Gauffin E, Petrie GN, et al. The efficacy of elevating anandamide via inhibition of fatty acid amide hydrolase (FAAH) combined with internet-delivered cognitive behavioral therapy in the treatment of post-traumatic stress disorder: a randomized, placebo-controlled clinical trial. Neuropsychopharmacology : official publication of the American College of Neuropsychopharmacology. 2025;50(10):1564.
- Pereira CF, Boileau I, Kloiber S, et al. Effects of pharmacological inhibition of fatty acid amide hydrolase on corticosterone release: a systematic review of preclinical studies. Discover mental health. 2025;5(1):51.
- Rademacher DJ, Meier SE, Shi L, et al. Effects of acute and repeated restraint stress on endocannabinoid content in the amygdala, ventral striatum, and medial prefrontal cortex in mice. Neuropharmacology. 2008;54(1):108.
- Wamsteeker JI, Kuzmiski JB, Bains JS, et al. Repeated stress impairs endocannabinoid signaling in the paraventricular nucleus of the hypothalamus. The Journal of neuroscience : the official journal of the Society for Neuroscience. 2010;30(33):11188.